quinta-feira, 13 de junho de 2013

Diálogos sobre homoquiralidade com Silvia Gobbo - Parte 1


"Se os princípios imediatos da vida são assimétricos, é porque, no seu desenvolvimento, eles são governados por forças cósmicas assimétricas; isto, na minha opinião, é um elo entre a vida na superfície da Terra e do cosmos, ou seja, o totalidade das forças espalhadas por todo o universo" - Pasteur


Em função dos meio que onipresentes textos sobre homoquiralidade como evidência de design inteligente (D.I.) de Marcos Eberlin pela internet, a Dra Silvia Gobbo e eu certa vez travamos um relativamente longo diálogo (via mensagens no FaceBook), durante o qual levantou-se uma boa quantidade de referências sobre as diversas questões envolvidas, que foram a base do conjunto de minhas respostas às questões propostas pelo notório defensor do D.I., e seguidamente, mesmo de criacionismo biblicista.

Este conjunto de mensagens é aqui transformado num artigo que sirva de referência a todos que desejam estudar sobre quiralidade nas moléculas bioquímicas ou que pretendam divertir-se (e esta é a palavra exata) refutando a argumentação pelo D.I. em questão.


A eficiência da homoquiralidade

"
homochiral eficience"

A explicação para a quiralidade está na economia. Uma seleção natural das homoquiralidades* tornou os processos mais eficientes, pela própria capacidade de formar-se as estruturas com as polimerizações adequadas, pois a não homoquiralidade - diferenciada em aminoácidos das de carbohidratos, propicia a capacidade de ter-se a polimerização. Um exemplo das estruturas formadas com uma certa simetria só possível pela homoquiralidade seriam os helicoides das proteínas, e similarmente, os helicoides dos ácidos nucleicos.[1][2][3]

* No plural pois há diferença entre as quiralidades de aminoácidos e carbohidratos, entre outras espécies químicas da bioquímica.
A passagem a seguir ilustra bem o papel da evolução química com seleção de quiralidade no ambiente pré-biótico, com a sua posterior perpetuação, e mesmo o tema sendo oriundo do enfoque nas possibilidades do exobiológico (a vida fora na Terra), adapta-se perfeitamente e é sempre realizada sobre afirmações da biopoese[4]:

“A homoquiralidade terrestre é uma conseqüência da provisão pós-acrecional de compostos orgânicos, aminoácidos particularmente não racêmicos, pela queda de meteoritos, micrometeoritos e, possivelmente, cometas sobre a Terra primitiva. Os excessos enantioméricos que inicialmente caracterizavam os aminoácidos foram amplificados no momento da polimerização pré-biótica alternando com hidrólises parciais. Os polipéptidos resultantes (não necessariamente constituído pelos aminoácidos de proteínas contemporâneos**) eram necessariamente assimétricos e alguns foram dotados com propriedades catalíticas. Estes polipeptídeos (protoenzimas) influenciaram a quiralidade dos produtos formados nas suas reações catalíticas, quer pela produção de um enantiômero específico a partir de reagentes quirais ou através da seleção de um enantiômero particular, no caso de reagentes quirais.”[5]

** Guardemos esta passagem atentamente.
Diversos mecanismos são propostos para a definição inicial de quiralidade de aminoácidos, desde o trabalho no “modelo de Frank” tanto em sistemas não-catalíticos, auto-catalíticos assimétricos, por certas questões de equilíbrio e por ação da luz.[6][7][8][9][10][11][12][13]

A ação dos minerais na seleção quiral de ribonucleotídeos também já é pesquisada.[14] A amplificação da quiralidade é evidenciada até em cristalizações auto-organizadas em água.[15]
Algumas observações da Dra Silvia, editadas:

1) Eberlin e outros chamam L.U.C.A. de “primeiro ser vivo” todo o tempo, isso porque ele mesmo escreveu
last uncommon., o que é uma interpretação errônea da questão.

2) Eberlin diz que é preciso formar 100 % de L-aminoácidos no ambiente para que a vida tivesse se formado dependendo destes quirais e mesmo na apresentação que acima foi citada [1], mostra que não trata-se de tal processo. Se tivermos um excesso enantiomérico, isso poderia ser amplificado por seleção natural (ainda puramente química), sendo a dificuldade explicar-se que não há necessidade de que o meio tenha 100% para a vida ter surgido assim.***

O maior volume de reagentes disponíveis levou a certa predominância de determinada quiralidade que por economia (sempre a seleção natural) levou ao predomínio desta quiralidade.

*** Aqui, comento, trata-se da questão das primeiras proto-enzimas auto-catalisadoras homoquirais, as primeiras proto-enzimas mantenedoras da homoquiralidade e a ação do meio mineral como selecionador de quiralidade.

Mas a questão pelo lado da polimerização “possível” é simples, pois esta depende da quiralidade. É o que chamamos em Síntese Química impedimento espacial (efeito estérico). Os efeitos estéricos advêm do fato de cada átomo dentro de uma molécula ocupa uma determinada quantidade de espaço. Se os átomos forem colocados demasiado próximos, há um custo em energia associado devido à sobreposição das nuvens eletrônicas (repulsão Pauli ou Born), e esta pode afetar a forma final da molécula e sua reatividade.[16]
Em adição, coloquemos que polimerizações assimétricas são bem conhecidas da química moderna, como as das maleimidas, que são compostos relacionados com as aminas que são os aminoácidos,[17][18] assim como o controle estérico das polimerizações também é campo de estudo.[19] O controle das separações enantioméricas por determinadas substâncias, entre estas, a norleucina, um alfa-aminoácido que não faz parte dos aminoácidos codificados pelo código genético, portanto não encontrado nas proteínas na natureza, e a pirrolidina, outra amina.[20][21][22] As interações quirais, como citamos, são dos fatores mantenedores nas polimerizações da geometria helicoidal.[23]
Molécula da maleimida - www.chemspider.com.

Molécula da norleucina - www.chemsynthesis.com.

São evidenciados fenômenos de efeitos estéricos na absorção da glicina, um aminoácido componente do conjunto dos relacionados com as formas de vida e com a fenilglicina, um artificial.[24][25][26] A fenilglicina, por su vez, mostra uma forte preferência quiral em suas interações com a adenina, uma das bases nucleicas.[27][28] A fenilglicina apresenta também uma ação de de-racemização do ácido mandélico, e tal se dá por ação biocatalítica.[29][30]


Enzima aminotransferase a partir da D-fenilglicina ou D-4-hidroxifenilglicina, passando por conversão de 2-oxoglutarato comportam-se com determinação exclusiva de grupo amino exclusiva, que é convertido seletivamente em ácido L-glutâmico, mostrando um interação seletiva em quiralidade de um aminoácido de quiralidade diversa do ácido obtido com determinação da quiralidade do ácido carboxílico obtido.[31]


www.sc.mahidol.ac.th

Há efeitos quirais e estéricos evidenciáveis na eficiência das ligações de nucleosídeos.[32]


Referências

1. Donna G. Blackmond; The Origin of Biological Homochirality; Cold Spring Harb Perspect Biol. 2010 May; 2(5): a002147. doi:  10.1101/cshperspect.a002147 - PMCID: PMC2857173


2. Kenso Soai, John Michael Brown; Amplification of Chirality; Springer, 2008. pg 120


3. Breslow R, Cheng ZL.; On the origin of terrestrial homochirality for nucleosides and amino acids. Proc Natl Acad Sci U S A. 2009 Jun 9;106(23):9144-6. doi: 10.1073/pnas.0904350106. Epub 2009 May 28.


4. John Cronin, Jacques Reisse; 3 Chirality and the Origin of Homochirality -


5. Bernard Barbier, Muriel Gargaud, Hervé Martin, Jacques Reisse; Lectures in Astrobiology: Vol I : Part 2: From Prebiotic Chemistry to the Origin of Life on Earth; Springer, 2006. pg 104


6. Frank, F. C., 1953. On spontaneous asymmetric synthesis. Biochim. Biophys. Acta, 11, 459-463

7. Raphaël Plasson, Hugues Bersini, and Auguste Commeyras; Recycling Frank: Spontaneous emergence of homochirality in noncatalytic systems; PNAS November 30, 2004 vol. 101 no. 48 16733-16738


8. KENSO SOAI, TAKANORI SHIBATA, HIROSHI MORIOKA & KAORI CHOJI; Asymmetric autocatalysis and amplification of enantiomeric excess of a chiral molecule; Nature 378, 767 - 768 (28 December 1995); doi:10.1038/378767a0


9. Yukio Saito, Hiroyuki Hyuga; Complete homochirality induced by the nonlinear autocatalysis and recycling; Chirality 09/2007; 19(8):589-60


10. Plasson R, Kondepudi DK, Bersini H, Commeyras A, Asakura K.; Emergence of Homochirality in Far-From-Equilibrium Systems: Mechanisms and Role in Prebiotic Chemistry; Chirality. 2007 Aug;19(8):589-600.


11. K. Tennakone; Spontaneous breaking of the L, D symmetry in photolytic production and degradation of amino acids; Origins of life and evolution of the biosphere 1990–1991, Volume 20, Issue 6, pp 515-519
12. Kenso SOAI; Asymmetric Autocatalysis and the Origin of Homochirality of Biomolecules -


13. Tsuneomi Kawasaki , Kenso Soai; Amplification of chirality as a pathway to biological homochirality; Journal of Fluorine Chemistry; Volume 131, Issue 4, April 2010, Pages 525–534


14. Hidehito Urata, Chie Aono, Norihiko Ohmoto, Yuko Shimamoto, Yoshiko Kobayashi, Masao Akagi; Efficient and Homochiral Selective Oligomerization of Racemic Ribonucleotides on Mineral Surface. Chemistry Letters; Vol. 30 (2001) No. 4 P 324-325

15. Helmut Zepik, Edna Shavit, Mao Tang, Torben R. Jensen, Kristian Kjaer, Gérard Bolbach, Leslie Leiserowitz, Isabelle Weissbuch, Meir Lahav; Chiral Amplification of Oligopeptides in Two-Dimensional Crystalline Self-Assemblies on Water; Science, Vol. 295, Issue 5558, pp. 1266-1269, February 15, 2002


16. Efeito estérico – Wikipédia


17. Maleimida – Wikipédia


18. Kenjiro Onimura, Hiromori Tsutsumi, Tsutomu Oishi; Asymmetric polymerization of N-substituted maleimides with organolithium — bisoxazolines complex; Polymer Bulletin, October 1997, Volume 39, Issue 4, pp 437-444


19. Shigeki Habaue, Yoshio Okamoto; Stereocontrol in radical polymerization; The Chemical Record, Volume 1, Issue 1, pages 46–52, 2001.
DOI: 10.1002/1528-0691(2001)1:1<46::aid-tcr7>3.0.CO;2-I

20. Norleucine – Wikipédia


21. Pyrrolidine – Wikipédia


22. Chen-Hsing Lin; Enantioseparation of Amino Acids on a Chiral Stationary Phase Derived from L-α-Norleucinyl- and Pyrrolidinyl-disubstituted Cyanuric Chloride by High-Performance Liquid Chromatography; Journal of the Chinese Chemical Society, 2005, 52, 799-804

23. David Zhigang Wang; Conservation of helical asymmetry in chiral interactions; Tetrahedron 61 (2005) 7125–7133


24. Glycine – Wikipédia


26. S Blankenburg and W G Schmidt; Steric effects and chirality in the adsorption of glycine and phenylglycine on Cu(110); Nanotechnology 18 424030, 2007. doi:10.1088/0957-4484/18/42/424030


27. http://en.wikipedia.org/wiki/Adenine

28. Q. Chen & N. V. Richardson; Enantiomeric interactions between nucleic acid bases and amino acids on solid surfaces; Nature Materials 2, 324 - 328 (2003) Published online: 13 April 2003 - doi:10.1038/nmat878


29.  Mandelic_Acid – Wikipédia

30. Verena Resch, Walter M. F. Fabian, Wolfgang Kroutil; Deracemisation of Mandelic Acid to Optically Pure Non-Natural L-Phenylglycine via a Redox-Neutral Biocatalytic Cascade; The Chemical Record, Volume 1, Issue 1, pages 46–52, 2001. - DOI: 10.1002/adsc.200900891

http://onlinelibrary.wiley.com/doi/10.1002/adsc.200900891/abstract

31. Research on D-phenylglycine aminotransferase and related enzymes - Nature of D-phenylglycine aminotransferase and related enzymes - D-phenylglycine aminotransferase enzyme

32. Laurent A, Naval M, Debart F, Vasseur JJ, Rayner B.; Chiral and steric effects in the efficient binding of alpha-anomeric deoxyoligonucleoside N-alkylphosphoramidates to ssDNA and RNA.; Nucleic Acids Res. 1999 Nov 1;27(21):4151-9.


sexta-feira, 17 de maio de 2013

Sobre o "provar a inexistência"

A partir de um debate sobre o tema

O chamemos "F":

F:

É impossível provar a inexistência?

Eu sempre vejo muita gente dizendo que é impossível provar a inexistência de algo. Também vejo muita gente dizendo que só se pode provar qualquer hipótese a partir do método experimental. Pois bem, gostaria de saber a opinião de vocês sobre esta hipótese:

Existe um triângulo de quatro lados na superfície de Marte.

Sendo um triângulo um objeto geométrico formado por três ângulos e três linhas retas, inscrito num plano e cuja soma dos ângulos internos é igual a dois ângulos retos.


A pergunta é:

Seria possível a existência de tal objeto no superfície de Marte ou em qualquer lugar do universo? Se a existência de tal objeto for impossível não se prova a inexistência de tal objeto? A prova necessita obrigatoriamente passar pelo método experimental?


Eu:

O exemplo citado na verdade é inadequado, pois não existem objetos geométricos de espécie alguma na natureza. São entes abstratos, frutos da lógica sobre axiomas, que é a matemática, em determinados campos, no caso, geometria. 

Logo, se foram definidos os axiomas, e seguida determinada lógica, o "objeto" não é inexistente, mas impossível de ser imaginado, o que são coisas completamente diferentes.


Um cisne preto, só conhecido no ocidente no século XVIII.


A questão da impossibilidade da demonstração da inexistência é mais adequadamente demonstrável por questões simples, banais, como seguindo os exemplos inicialmente propostos por Bacon (talvez com anteriores!), e desenvolvidos por muitos outros (destacadamente Popper e Russel, chegando-se a um ser/objeto completamente entendível e descrito, e apresentando-se uma característica jamais observada, como os cisnes pretos (na verdade, há muito um falseamento) ou o meu preferido, o "corvo vermelho".

Acrescentar-se a isso delírios como bules de chá em planetas, anões no Sol ou mesmo fadas, é apenas um exagero do discurso.

Mas as bases da indemonstrabilidade estão aí.

Em tempo: por Matemática, em qualquer de seus campos, e consequentemente por lógica, jamais se chega a um entendimento da natureza em si, quanto mais a demonstração da existência ou inexistência de qualquer coisa.

O formalismo é o que resta em Matemática aplicada, e construtivismo em Física está morto e enterrado, predominantemente pelos "irracionais transcendentes aleatórios", ou "constantes ômega", que prefiro chamar de números de Chaitin.

Obs.: Contante ômega, "a original". - Wiki {en}

Em caso de renitência, demonstração, talvez em 10 linhas.


philosophiesofmen.blogspot.com


F, a "R", outro participante do debate:


Eu entendo você. Você tem alguma razão ao dizer o que está dizendo. Mas acho que você está sendo conservador demais. É a mesma coisa que observar cisnes brancos numa lagoa e dizer que só existem cisnes brancos. Aí você  vai a outra lagoa e vê cisnes pretos e diz que não são cisnes, que só existem cisnes brancos.

O que eu quero dizer é que a maioria das propriedades que atribuímos a algum ser são arbitrárias. Quer dizer elas não envolvem nenhuma necessidade. Nós só atribuímos estas propriedades porque a experiência nos ensinou a ligar tais propriedades a tais seres. Nada impede que algum dia, em outro planeta, ela nos ensine a ligar outras propriedades a seres semelhantes.

F a mim:

Mas isso não é uma prova de inexistência? E mais, não é uma prova não experimental?

Eu:

Sobre cisnes brancos e "propriedades arbitrárias".

Sim, exatamente pois as definições, nomenclaturas, classificações e até postulados científicos são acordos, oriundos, normalmente, de sensos comuns.

Interessante é, por exemplo, o conceito de dimensão.

É óbvio que dizemos que são três espaciais pela nossa tradição euclidiana, mas na verdade, a natureza se lixa para isso.

Obs.: Entenda-se que a natureza "É", e o que observamos e afirmamos dela não é como ela tem de ser, e sim, como a apreciamos e afirmações que construímos para ter a melhor avaliação de como ela seja. Ela não muda em função de nossos desejos.

Acrescento: Embora seja uma obviedade que mudo a posição de uma pedra por assim o desejar, mas não mudo as leis e composição que regem e fazem a pedra ser o que é, e poderia por minúcias nesta questão até a exaustão, e acredito que o ponto fique bem entendido, da mesma maneira que me parece banal que não podemos mudar o nascimento do Sol, ou sua evolução até extinguir-se como estrela que nos seja útil, etc.

Continuo:

Bem analisada, a natureza, por exemplo até na Gravidade Quântica em Loop apresenta-se mais tratável por um "grafo", uma espuma de espaço-tempo borbulhando para todos os lados, em "quanta espaço-tempo".


universe-review.ca


Muito do que fazemos em Biologia, por exemplo, são o que chamo de "aristotelismos classificatórios". Assim, é óbvio que me classifico como humano, mas na cladística, não apresento separação alguma, no espaço e no tempo, no cladograma, das baratas que piso (toda a vida tem uma continuidade no tempo, até encontrara-se um táxon completamente separado). Noutras palavras, poderia eu, se habilitado por algum cósmico poder, viajar entre todos os ramos do cladograma geral da vida, percebendo os parentescos de toda ela ao longo da história.


blog.geoffchristou.com


Assim, classificamos cisnes não só por sua óbvia capacidade de cruzamento (no que classificamos até gênero, como entre cavalos, asnos e zebras, ou entre vacas e bisões, e mais distantes, búfalos e demais bovinos), mais tecnicamente, pela genética.

Em suma, continuamos com o problema do "o que é uma rosa", ainda mais profundo e definitivo de "qual o nome que deus da à rosa", típico da Filosofia Medieval.

Aliás, daí o título "O Nome da Rosa", do livro de Umberto Eco.

A natureza não possui "isso ou aquilo", mas apenas as agregações, pelas forças interativas, de seus componentes, os verdadeiros entes, que são as partículas (ou seriam adensamentos de campos?).

Assim, a questão continuaria, se considerarmos a "forma", de um "anão", ainda que apenas nisso um "anão", no interior do Sol, ou algo que parecesse um bule orbitando Saturno (?) ou mesmo, gnomos verdes guardando raríssimos corvos vermelhos, abduzidos em nosso passado.

Assim, só podemos afirmar, apenas com confiança limitada, a existência de algo pela observação e experiência, e não o sim ou o não de sua existência, a partir do raciocínio, por modus ponens, até pois nossas premissas sempre são pouco confiáveis.

Só nos resta, pois, o modus tollens.


Voltando a:
"Mas isso não é uma prova de inexistência? E mais, não é uma prova não experimental? "

Primeiro me responda:

1) Existe um único triângulo no universo, material e detectável ou são apenas abstrações de sua mente?

2) Pode se apresentar uma única experiência a se fazer, no sentido popperiano de experimento, com um único triângulo?

Em tempo, me apresente uma medida, em uma unidade que seja exata, evidentemente perceptível na natureza, que se adapte a alguma forma geométrica ideal ou perfeita.

Pediria, por exemplo, a diagonal de um quadrado, que por ter lados inteiros (p.ex.), terá de ter diagonal em valor irracional, e infelizmente, para seu argumento, não existe comprimento em fração do comprimento de Planck que tenha nexo para a medição humana.

E como irracionais podem ser definidos pela soma de infinitas frações...

Obs.: E ainda que tal fosse discutível - e é, nem "meio átomo", quanto mais fração de infinitas casas decimais de átomo, exatamente porque na natureza as coisas não são contínuas, como compostas de infinitos pontos, infinitamente divisíveis.

Infelizmente, o universo não é geométrico euclidianamente falando, mas apenas modelável em geometria, e limitadamente.


Como sempre, recomendamos a leitura de: The Limits of Reason, Gregory Chaitin
Para as questões referentes à Gravidade Quant. em Loop - Quantum Foam and Loop Quantum Gravity - universe-review.ca


_

terça-feira, 23 de abril de 2013

Homoquiralidade, origem, questões relacionadas e uma certa derrapada de famoso cientista


Recentemente participei de um "debate" (percebam-se as aspas) com o Dr. Eberlin, notório defensor do design inteligente no Brasil, que propõe que a homoquiralidade da moléculas bioquímicas é uma prova da ação de uma inteligência na história da vida.

Moléculas quirais - NASA


As questões propostas e as respostas podem ser vistas no prolífico site Evolution Academy.


A HOMOQUIRALIDADE – “OURO DOS TOLOS” E O ÔNUS DA PROVA


{PARTE 1} RESPOSTAS A MARCOS EBERLIN


{PARTE 2} RESPOSTAS A MARCOS EBERLIN


{PARTE 3} RESPOSTAS A MARCOS EBERLIN


{PARTE 4} RESPOSTAS A MARCOS EBERLIN


{PARTE 5} RESPOSTAS A MARCOS EBERLIN


{PARTE 6} RESPOSTAS A MARCOS EBERLIN


{PARTE 7} RESPOSTAS A MARCOS EBERLIN


{PARTE 8} RESPOSTAS A MARCOS EBERLIN


{PARTE 9} RESPOSTAS A MARCOS EBERLIN


{PARTE 10} RESPOSTAS A MARCOS EBERLIN


Aqui, publicaremos por hora um texto contendo a explicação de por qual motivo uma questão dele contém um erro em Química Orgânica e um texto recente sobre homoquiralidade das moléculas bioquímicas, uma hipótese sobre o mecanismo de sua origem em meio abiótico (sem vida) e uma relação deste fenômeno da geometria das moléculas bioquímicas com a hipótese do "mundo de RNA".

Por fim, acrescentaremos a recém formalizada falácia sobre o tema.

Assim que possível, serão publicadas revisões e ampliações das respostas apresentadas a quem quer dizer que o "designer" necessita operar para acertar o lado de determinadas estruturas moleculares, senão sua obra não pode funcionar.


Hidrólise de aminoácidos ramificados

Algumas c
onsiderações sobre a estabilidade dos monômeros dos peptídeos

Devemos separar completamente a hidrólise de aminoácidos ramificados do que seja a hidrólise de um a ligação peptídica, ligação esta que é a formação de um grupo amida.
[1]

Uma rápida consulta mesmo numa fonte trivial como a Wikipedia em inglês já permite entender do que tratamos, em especial para os não acostumados com a Química.

“Ligações amida constituem uma característica que define as moléculas de proteínas, a estrutura secundária das quais é devida, em parte, às capacidades das ligaçções de hidrogênio das amidas. Ligações amida em um contexto bioquímico são chamadas de ligações peptídicas quando ocorrem na cadeia principal de uma proteína e ligações isopéptideas quando elas ocorrem em uma cadeia lateral da proteína.”
[2]

Da mesma fonte trivial, vamos destacar especialmente:

“A ligação amida é formada facilmente, confere rigidez estrutural, e resiste à hidrólise.”
[2]

Também na trivial Wikipedia:

“Os ácidos minerais fortes podem prontamente hidrolisar as ligações peptídicas em proteínas. No entanto, algumas proteínas são extremamente resistentes à hidrólise. Um exemplo bem conhecido é a ribonuclease A, e um método para a sua purificação envolve o tratamento de extractos em bruto com ácido sulfúrico quente de modo a que outras proteínas tornam-se degradado enquanto a ribonuclease A é deixada intacta.”
[3]

E some-se a referência confiável como o Protein Data Bank.
[4]

Assim, as polimerizações de aminoácidos não são facilmente hidrolisadas, e tecidos formados de colágeno são bastante resistente à soluções ácidas e alcalinas, e só são degradados realmente quando condições cáusticas entram em ação. Proteínas como a queratina inclusive permitem alta resistência à água somando este fator, e contando com formação de “pontes” de radicais altamente reativos, como os dissulfetos gerando um significativo problema em sua degradação para os mais agressivos organismos decompositores, e o ambiente marinho na história da vida sempre foi o mais propício a sobrevivência de seres vivos com alto teor de água, e frágeis paredes constitutivas, como os cnidários.
[5][6]


Poupemo-nos de falar nos microorganismos extremófilos, capazes de viver nos mais variados ambientes altamente reativos.

Mesmo entre animais mais complexos encontramos espécies aptas ao meio agressivo, como a Poecilia sulphuraria, e meios com sulfetos são seguidamente associados com meios sulfurosos, e disto, ácidos.[7][8]

Então, dado que temos de aqui tratar da degradação por hidrólise apresentada, vejamos quais sõ os aminoácidos que apresentam ramificação.

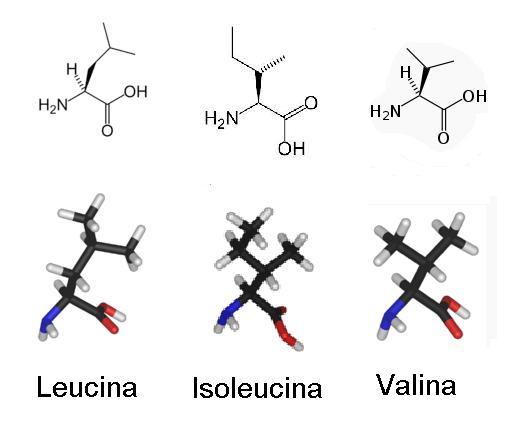
Uma rápida consulta nos leva a leucina, a isoleucina e a valina. Apresentaremos suas estruturas abaixo comparativamente, para que evidenciemos seu “ramo” que representa o que seja o aminoácido, e coloquemos na mesma direção suas ramificações.


Percebamos que a estrutura de aminoácido é a mesma*, e a ramificação é um hidrocarboneto, digamos, “puro”. Para a leucina uma estrutura “terc-butanoica”, para a isoleucina “2-butanoica” e para a valina “2-propanoica”.

*Origem de síntese comum?

Agora, citemos uma coisa clássica:

“Algumas classes de poluentes que são geralmente resistentes à hidrólise, tal como alcanos.”
[9]
Se estas estruturas são simplesmente estruturas apolares, alquídicas, alcanos, como pode-se afirmar para elas hidrólises?

Então, a hidrólise não é processo que ocorra corriqueiramente alterando tais aminoácidos, e sim, no máximo, quebrando a cadeia peptídica, como já apresentado em outras oportunidades por nós e ao qual acrescentamos que para obter a absorção de dipeptídeos, é realizada até por fitoplânctons.
[10]


Referências


1. IUPAC. Compendium of Chemical Terminology, 2nd ed. (the "Gold Book"). Compiled by A. D. McNaught and A. Wilkinson. Blackwell Scientific Publications, Oxford (1997). XML on-line corrected version: http://goldbook.iupac.org (2006-) created by M. Nic, J. Jirat, B. Kosata; updates compiled by A. Jenkins. ISBN 0-9678550-9-8. doi:10.1351/goldbook.


4. "Ribonuclease A".- Protein Data Bank.


5. E. J. VAN SCOTT, M.D.; PETER FLESCH, M.D., Ph.D.; SULFHYDRYL GROUPS AND DISULFIDE LINKAGES IN NORMAL AND PATHOLOGICAL KERATINIZATION; AMA Arch Derm Syphilol. 1954;70(2):141-154. doi:10.1001/archderm.1954.01540200001001. http://archderm.jamanetwork.com/article.aspx?articleid=524062


6. Dr. Jiří Kunert; Biochemical mechanism of keratin degradation by the actinomycete Streptomyces fradiae and the fungus Microsporum gypseum: A comparison; Journal of Basic Microbiology, Volume 29, Issue 9, pages 597–604, 1989 - DOI: 10.1002/jobm.3620290909


7. Tobler, M., R. Riesch, F. J. Garcia de Léon, I. Schlupp & M. Plath (2008): Two endemic and endangered fishes, Poecilia sulphuraria (Alvarez, 1948) andGambusia eurystoma Miller, 1975 (Poeciliidae, Teleostei), as only survivors in a small sulphidic habitat. Journal of Fish Biology 72 (3): 523-533.http://onlinelibrary.wiley.com/doi/10.1111/j.1095-8649.2007.01716.x/abstract

8. Iliuta Alexandru; SULPHUROUS MINERAL WATERS; Balneo-Research Journal Vol.2, Nr.3, 2011.


10. Margaret R. Mulholland and Cindy Leeb; Peptide hydrolysis and the uptake of dipeptides by phytoplankton; Limnol. Oceanogr., 54(3), 2009, 856–868


Para consultar este texto no formato "Google Docs": docs.google.com - Hidrólise


Homoquiralidade, fundamentos de sua seleção mineral abiótica e relação com a hipótese do “mundo de RNA”


A origem mais remota da homoquiralidade de L-aminoácidos, é desde muito um mistério na formação das primeiras formas de vida e ainda antes na sua fase de evolução química.

Compreender a indução de quiralidade e seus processos de amplificação e a construção de superfícies globalmente homoquirais representam desafios essenciais em estudos de quiralidade de superfície.
Pesquisa dos fundamentos dos processos físico-químicos minerais envolvidos

Induz-se a homoquiralidade global em redes enantiomórficas bidimensionais de moléculas aquirais via co-montagem com co-absorventes quirais.
[Nota 1]

As investigações por microscopia de tunelamento com varredura e as simulações mecânicas moleculares demonstram que a quiralidade pontual dos co-absorventes transfere-se para a quiralidade organizacional das unidades do conjunto através de interações supramoleculares enantioseletivas e são amplificadas hierarquicamente na homoquiralidade global de redes bidimensionais.
[Nota 2][1]

A homoquiralidade global do conjunto de rede mostra dependência não linear sobre o excesso enantiomérico de co-absorventes quirais em fase de solução, ou seja, independe da proporção dos enantiômeros, o que demonstrou, pela primeira vez, a validação das "regras" para a maioria dos controles de homoquiralidade de moléculas aquirais na
interface líquido/sólido. Tal efeito de amplificação e indução de quiralidade não linear promete uma nova abordagem para o controle bidimensional da homoquiralidade e pode revelar conhecimentos importantes sobre a catálise heterogénea assimétrica, a separação quiral e a cristalização quiral.


A aminoacilação como processo seletivo quiral


O processo - conjunto de reações químicas que é a aminoacilação de tRNA pode ter provido uma seletividade quiral, uma vez que é o primeiro processo onde encontram-se aminoácidos e o RNA.[Nota 3][2]

Um RNA de dimensões menores, chamado no meio do estudo da biopoese “minihelix”, sendo o provável progenitor do tRNA moderno foi aminoacido por um fosfato oligonucleótido aminoacilo que exibiu uma clara preferência para a forma L, em oposição aos D-aminoácidos. Um sistema de RNA “de imagem espelhada” com a L-ribose exibe seletividade oposta, ou seja, apresenta uma aparente preferência para os D-aminoácidos.

A seletividade para os L-aminoácidos está baseada na estereoquímica do RNA. A cadeia lateral de D-aminoácidos está localizado mais perto do terminal de adenosina do
minihelix, fazendo com que eles colidam e interferam durante a etapa de transferência de aminoácidos. Estes resultados sugerem que o mundo RNA hipotético que precedeu o cenário de proteínas determinou a homoquiralidade de L-aminoácidos através da aminoacilação de tRNA.


Notas

1. DR. FÚRIO DAMIANI, DR. PETER JÜRGEN TATSCH; MICROSCÓPIO DE TUNELAMENTO COM VARREDURA (STM)


2. Enantiomórfico: Qualquer um de um par de cristais, moléculas ou compostos que são imagens espelhadas um do outro, mas não são idênticos e que rotacionam o plano de luz polarizada da mesma forma, mas em direções opostas. Também chamado enantiômero, em química, um isômero óptico.


3. Aminoacilação é o processo de adição de um grupo aminoacilo a um composto.

Referências

1. Koji Tamura; Origin of amino acid homochirality: Relationship with the RNA world and origin of tRNA aminoacylation; BioSystems 92 (2008) 91–98


2. Ting Chen, Wen-Hong Yang, Dong Wang & Li-Jun Wan; Globally homochiral assembly of two-dimensional molecular networks triggered by co-absorbers; Nature Communications 4, Article number: 1389 doi:10.1038/ncomms2403


Para consultar este texto no formato "Google Docs": docs.google.com - Homoquiralidade


As inocorrentes reações laterais
...e a repetição disfarçada de uma falácia já clássica


“Verdadeiros robôs moleculares a orquestrar com uma eficiência a formação de ligações peptídicas, evitando as reações laterais mortais à Vida, e com uma eficiência acima de 5 noves (1 erro em 1 bilhão) a em um processo frenético (várias ligações peptídicas por segundo).” - Exclusiva com Marcos Eberlin. A origem da vida. - www.origemedestino.org.br


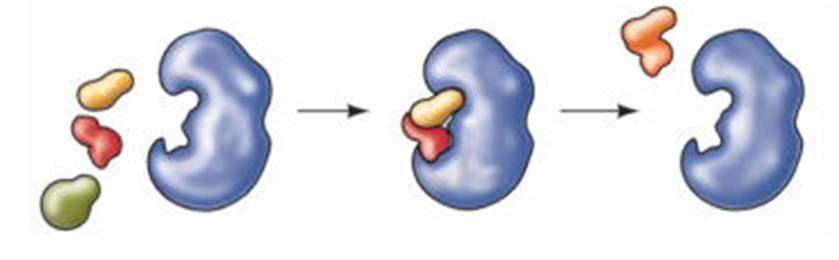
Representação de uma enzima em ação, no caso, produzindo claramente uma síntese por adição. - www.slideboom.com


O primeiro erro
Primeiramente, vejamos da frase acima o trecho: “Verdadeiros robôs moleculares a orquestrar com uma eficiência a formação de ligações peptídicas [...]”

Claro que as moléculas enzimas são “robôs moleculares”. Evidente que os mecanismos moleculares são autônomos e executam o que sua estrutura determina*, e coordenadas pelo DNA e RNA, realizam suas tarefas, e mesmo que sem estes coordenadores, se íntegras, continuarão a realizar sua tarefa/atividade de catálise, tanto que pode-se usar enzimas puras em processos industriais com as mais diversas finalidades.
*Aqui, deve-se cuidar com o termo “determina”, pois veremos adiante que há instabilidades sempre relacionadas à ação das enzimas e de qualquer outra espécie bioquímica em ação no biológico ou externamente a um organismo.

Exemplo banais e de grande escala são a produção de biodiesel ou a produção de “açúcares invertidos”.[1][2][3][4][5] A produção de aminoácidos por enzimas, já com aplicações na indústria, já é uma mostra de que as estrutura peptídicas possuem a capacidade de produzir os monômeros que constituirão outras estruturas peptídicas.[6]

Até mesmo a produção de aminoácidos da quiralidade desejada podem ser obtidos pela ação das enzimas, o que por si já mostra a seletividade quiral que tais compostos apresentam.[7][8]  Estes processos já apontam que a queiralidade é definida por enzimas, ainda que a quiralidade destas seja homoquiral. Muitos destes processos se dão por hidrólise enzimática, o que já descaracteriza que uma alegada hidrólise seja ou tenha sido prejudicial à formação de componentes da vida, num meio então abiótico, ou num momento posterior, nutrientes tóxicos ao meio já biótico.[9][10][11][Nota 1]

Esta capacidade de seletividade e estabilidade da atividade catalítica é a própria segurança de se produzir formas enantiomericamente puras, noutras palavras, selecionadas quiralmente, garantida pela utilização de enzimas em escala industrial.
[12]

Esse processos enzimáticos, quando estão inclusos em processos biotecnólógicos, com o uso de bactérias e leveduras como seus agentes, é sempre os que estão por trás dos processos fermentativos utilizados na indústria.[13][14]

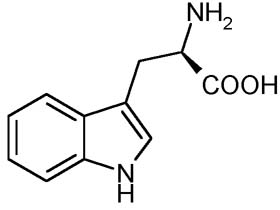
Um exemplo deste tipo de síntese com quiralidade resultante, selecionada, definida é a produção industrial de triptofano que tornou-se predominantemente biossintética visando evitar a presença de espécies químicas tóxicas,[15] e baseia-se hoje na fermentação de serina e indol usando formas selvagens ou geneticamente modificadas de bactérias tais como B. amyloliquefaciens, B. subtilis, C. glutamicum ou E. coli. Estas cepas transportam certas mutações que previnem a recaptação de aminoácidos aromáticos ou múltipla ou sobre-expressa ação dos operons relacionados à síntese do triptofano.[Nota 2]

A molécula do triptofano - www.daviddarling.info.

Esta conversão - a reação obtida que leva determinadas espécies químicas a tornarem-se outras - é catalisada pela enzima triptofano-sintase.
[16]
A enzima triptofano-sintase - www.bioq.unb.br.


O erro neste frase está em “eficiência”, e logo veremos o motivo.

Um segundo erro

“[...] e com uma eficiência acima de 5 noves (1 erro em 1 bilhão) a em um processo frenético (várias ligações peptídicas por segundo) [...]”

Mas percebamos que a ação das enzimas e os próprios processos biológicos não são tão exatistas em quiralidade, pois D-enantiômeros de aminoácidos tem sido detectados com técnicas cromatográficas altamente sensíveis nos próprios fluido fisiológicos humanos.
[17]

A razão para tal é que as moléculas biológicas, sendo como já vimos frequentemente assimétricas em relação à sua estereoquímica, nestas características são essenciais à sua função. Por isso, posicionamentos errôneos de estruturas biomoleculares quanto à sua quiralidade podem resultar em erros de configuração, que num caso, podem gerar toxidade, útil para peçonhas, por exemplo, como se evidencia em certos moluscos, ou alta resistência ao meio, inclusive, à outras enzimas, como se vê nas paredes bacterianas.
[18]

Tais alterações das atividades catalíticas seletivas de quiralidade, oriundas de mutações tem inclusive aplicações industriais.
[19]

Mas neste erro percebo uma modificação da falácia de Hoyle, agora com uma peculiar “derivada em relação à variável tempo”, apresentando como miraculosa a taxa no tempo apresentada. 

Obviamente, a taxa não é de todo miraculosa em tempo, pois os processos são reações químicas, e tem de pelos seus mecanismos de possuirem naturalmente tal velocidade, mas a taxa de erros apresentada, apesar de se mostrar baixa, é o suficiente para tornar em cascata todo um processo celular inviável, tóxico ou talvez até resultando no maléfico que é o cancerígeno, por exemplo, ou o simplesmente tóxico, nas enzimopatias, causadoras de diversas doenças, como anemias.[20][21][22][23]


Um terceiro erro

“[...] evitando as reações laterais mortais à Vida [...] ”

Já vimos pelo acima que os erros em reações, em quiralidade, ocorrem, e não necessariamente são maléficos, e exatamente por ocorrerem, uma falácia de Hoyle abordada por uma taxa no tempo não é de forma alguma argumento por perfeição do processo de ação das enzimas, da homoquiralidade selecionada e exatamente por isso tais processos são causadores claros de doenças.

Mas analisemos agora o termo “reação lateral”, e nos foquemos nas estruturas dos aminoácidos, e a forma com que realizam polimerização.

Uma rápida passagem de olhos por uma ilustração da Wikipédia com as estruturas dos 21 aminoácidos encontrados em eucariotas, agrupados de acordo com suas cadeias laterais, já permite perceber duas coisas:

1) Há estruturas laterais que também são aminas ou ácidos carboxílicos, de onde  polimerização peptídica
pode e até, dependendo da estrutura a qual o processo de polimerização chegará coordenado por enzimas polimerases deve apresentar “reações laterais”.

2) Há estruturas laterais que não são reativas numa polimerização, o que já havia tratado, similarmente, para o caso de hidrólise nas cadeias laterais, não podendo dali resultar qualquer polimerização peptídica.

Portanto, a existência de “reações laterais” fica restrita pelo próprio tipo de reação que seja a “neutralização” acido carboxílico / amina, resultando na poliamida que é toda estrutura peptídica, e como vimos por outras vias aqui, nem sempre os erros em tais polimerizações são nocivas
per se, como evidencia-se na formação de enzimas que “digerem” os subprodutos da produção de nylon, assunto de outro de nossos trabalhos.


Os aminoácidos - Wikipedia.


Como já disse antes: “Mas meu senhor...”


Notas

1. Açúcar ou xarope de açúcar invertido é uma mistura de glicose e frutose obtida pela divisão da sacarose, o açúcar da cana) em seus dois componentes.

2. Operon é conjunto de genes nos procariontes e em alguns eucariontes que se encontram funcionalmente relacionados, contíguos e controlados coordenadamente, sendo todos expressos em apenas um RNA mensageiro

Referências

1. A novel enzymatic catalyst for biodiesel production -
www2.cnrs.fr
2. Ranganathan SV, Narasimhan SL, Muthukumar K.; An overview of enzymatic production of biodiesel. Bioresour Technol. 2008 Jul;99(10):3975-81. Epub 2007 Jun 25.

3. Lene Fjerbaek, Knud V. Christensen, Birgir Norddahl;
A Review of the Current State of Biodiesel Production Using Enzymatic Transesterification; Biotechnology and Bioengineering, Vol. 102, No. 5, April 1, 2009

4. Nevena Luković, Zorica Knežević-Jugović and Dejan Bezbradica; Biodiesel Fuel Production by Enzymatic Transesterification of Oils: Recent Trends, Challenges and Future Perspectives - cdn.intechopen.com


6. Humg-Yo Hsiao, James F. Walter, David M Anderson and Bruce K. Hamilton;
Enzymatic Production of Amino Acids - www.nottingham.ac.uk

7. S. Deepa, et al; Enzymatic production and isolation of d-amino acids from the corresponding 5-substituted hydantoins; Process Biochemistry, Volume 28, Issue 7, 1993, Pages 447–452.

8. Kimiyasu Isobe, Hiroshi Tamauchi, Ken-ichi Fuhshuku, Shouko Nagasawa, and Yasuhisa Asano; A Simple Enzymatic Method for Production of a Wide Variety of D-Amino Acids Using L-Amino Acid Oxidase from Rhodococcus sp. AIU Z-35-1; Enzyme Research, Volume 2010 (2010), Article ID 567210, 6 pages - doi:10.4061/2010/567210

9. Tan Soon Ann; PRODUCTION OF AMINO ACIDS BY THE ENZYMATIC HYDROLYSIS OF SOYA PROTEIN ISOLATE AND WHEAT GLUTEN - www.aseanfood.info

10. Wolfgang Leuchtenberger, Klaus Huthmacher, Karlheinz Drauz; Biotechnological production of amino acids and derivatives: current status and prospects; Appl Microbiol Biotechnol (2005) 69: 1–8 - DOI 10.1007/s00253-005-0155-y

11. Kamphuis J, Boesten WH, Broxterman QB, Hermes HF, van Balken JA, Meijer EM, Schoemaker HE.; New developments in the chemo-enzymatic production of amino acids.; Adv Biochem Eng Biotechnol. 1990;42:133-86.

12. Matcher GF, Dorrington RA, Burton SG.; Enzymatic production of enantiopure amino acids from mono-substituted hydantoin substrates. Methods Mol Biol. 2012;794:37-54. doi: 10.1007/978-1-61779-331-8_3.

13. Walter Carvalho, Débora D. V. Silva, Larissa Canilha e Ismael M. Mancilha; ADITIVOS ALIMENTARES PRODUZIDOS POR VIA FERMENTATIVA PARTE I: ÁCIDOS ORGÂNICOS; Revista Analytica, Agosto/Setembro 2005, Nº18. - revistaanalytica.com.br
14. Débora D. V. Silva, Walter Carvalho, Larissa Canilha e Ismael M. Mancilha; ADITIVOS ALIMENTARES PRODUZIDOS POR VIA FERMENTATIVA - PARTE 2: AMINOÁCIDOS E VITAMINAS; Revista Analytica, Outubro/Novembro 2005, Nº19. - revistaanalytica.com.br
15. John Fagan, Ph.D.; Summary of the Tryptophan Toxicity Incident - www.nemsn.org

16. Ikeda M (2002). "Amino acid production processes". Adv. Biochem. Eng. Biotechnol. Advances in Biochemical Engineering/Biotechnology 79: 1–35. doi:10.1007/3-540-45989-8_1. ISBN 978-3-540-43383-5. PMID 12523387
17. Ercal N, Luo X, Matthews RH, Armstrong DW.; In vitro study of the metabolic effects of D-amino acids. Chirality. 1996;8(1):24-9.

18. Eduard Schreiner, Leonardo G Trabuco, Peter L Freddolino and Klaus Schulten; Stereochemical errors and their implications for molecular dynamics simulations; Schreiner et al. BMC Bioinformatics 2011, 12:190. - www.biomedcentral.com
19. Chemically modified mutant serine hydrolases show improved catalytic activity and chiral selectivity - United States Patent 8357524 - www.freepatentsonline.com

20. Gregory H. Foster, Cassandra S. Armstrong, Ramesh Sakiri and Vernon L. Tesh; Shiga Toxin-Induced Tumor Necrosis Factor Alpha Expression: Requirement for Toxin Enzymatic Activity and Monocyte Protein Kinase C and Protein Tyrosine Kinases; Infect. Immun. September 2000 vol. 68 no. 9 5183-5189 - doi: 10.1128/​IAI.68.9.5183-5189.2000

21. Burns, M. B., Lackey, L. et al. (2013). APOBEC3B is an enzymatic source of mutation in breast cancer Nature DOI: 10.1038/nature11881

22. Jean-Jacques Brière, Judith Favier, Anne-Paule Gimenez-Roqueplo, and Pierre Rustin; Tricarboxylic acid cycle dysfunction as a cause of human diseases and tumor formation; Am J Physiol Cell Physiol December 2006 vol. 291 no. 6 C1114-C1120.

23. Laurent R. Chiarelli, et al; Functional analysis of pyrimidine 5-nucleotidase mutants causing nonspherocytic hemolytic anemia; Blood 2005 105: 3340-3345 - doi:10.1182/blood-2004-10-3895


Para consultar este texto no formato "Google Docs": docs.google.com - As inocorrentes reações laterais

Falácia de Eberlin

De maneria similar à falácia de Hoyle [Nota 1], a falácia de Eberlin apresenta como impossível um passo de seleção de moléculas de determinada quiralidade destacadamente para os aminoácidos, monômeros das proteínas, e outras específicas para as diversas moléculas constituintes das grandes moléculas bioquímicas, como os carbohidratos e as bases nucleicas, e que “portanto”, tal seleção “tem de ser” a ação de um design inteligente

A falácia está em que desconsidera-se que as polimerizações já sejam um fator de seleção para a constituição de moléculas homoquirais, por impedimentos estéricos[Nota 2], existam evidências de mecanismos inorgânicos, minerais, de síntese seletiva em quiralidade, o que chama-se catálise assimétrica[1], que as polimerizações dos primeiros aminoácidos poderiam perfeitamente ter produzido formas enzimáticas capazes de catálise assimétrica e que posteriormente, na biopoese[Nota 3], as enzimas mantém a quiralidade sendo selecionada e perpetuada, pois as enzimas são indiscutivelmente catalisadores assimétricos.


Lembrando a falácia de Hoyle e o comentário feito sobre ela por John Maynard Smith, biólogo: “O que está errado com isto? Essencialmente, é que nenhum biólogo imagina que estruturas complexas apareçam em um único passo.”; afirmamos, similarmente: “Essencialmente, é que nenhum bioquímico envolvido com a biopoese ou com formas de vida extintas e vivas imagina que estruturas moleculares homoquirais tenham aparecido miraculosamente e contra as leis da Química na história da vida em um único passo, de um ambiente completamente enantiomérico
[Nota 4] , e muito menos que hoje perpetuem-se por milagre, ainda que com suas exceções, como proteínas de venenos de moluscos e paredes de diversas bactérias”. Notas

1. Francisco Quiumento;
Falácia de Hoyle - Scientia
2. Efeito estérico - Wikipédia.
3. Biopoese (
do grego bio, vida, +poiéo, produzir, fazer, criar) - Teorização sobre a origem química da vida - Wikipédia.
4. Termo usado em Cristalografia e em moléculas na Química. Algo formado das mesmas partes dispostas em ordem inversa, de tal modo que sejam simétricas em relação a um plano. Referências

1.
Catálise assimétrica e o Prêmio Nobel de química 2001 - QNEsc


Para consultar este texto no formato "Google Docs": docs.google.com - Falácia de Eberlin


Extras

  • Diálogos sobre homoquiralidade com Silvia Gobbo - Parte 1 / Parte 2